観測されない媒介変数はネットワークから消えてくれない
On this page
要旨
未観測の媒介変数が、生物学的ネットワークの推定と介入予測へ与える制約を文献と合成例で検討した。線形の二段モデルでは媒介変数を消去しても履歴の項が残り、観測応答への適合が良くても二つの速度定数のどちらが媒介物の消失を表すかは決まらなかった。媒介物の消失を操作した際の平均応答は近くても振れ幅はどちらの速度定数を変えるかで異なった。有効な相互作用の予測と、分子機序・介入先の特定は別の検証を要する。
文献の確認日:2026年10月8日。
背景と目的
二つの細菌の個体数が連動している。片方が増えると、少し遅れてもう片方も増える。時系列からネットワークを描けば、細菌Aから細菌Bへ矢印が引かれるかもしれない。
しかし、その間にAが放出した代謝物があったらどうだろう。観測装置に代謝物の列がないだけで、分子が働く過程まで消えるわけではない。
観測されない媒介変数は、因果ネットワークから消えてくれない。 消えるのはデータ表の列であって、その変数を通じた作用ではない。そして、その作用を表すパラメータの一部は、残った列からは決められなくなる。
Eric Kernfeldは、Unobserved layers in biological network inference (1)について、RNAだけを測ると、タンパク質、その修飾、複合体、ホルモン、クロマチン状態といった調節の層が抜け落ちる問題を指摘している。本記事では、この問題を、時系列の数理、微生物の化学物質を介した相互作用、単一細胞データを使った遺伝子調節ネットワーク、創薬の機序評価へつなげて考える。予測と機序推論の区別そのものは、前の記事 (2)で扱った。本記事はその続きとして、「測っていない変数」が何を決められなくするかに焦点を当てる。
対象と確認範囲
時系列推論、化学物質を介した微生物相互作用、遺伝子調節ネットワーク、薬理学の媒介に関する選択文献を比較する。独自の計算は既知入力を与えた線形モデルの合成例であり、実測データの再解析や網羅的レビューではない。
直接効果・間接効果・交絡
まず用語をそろえる。
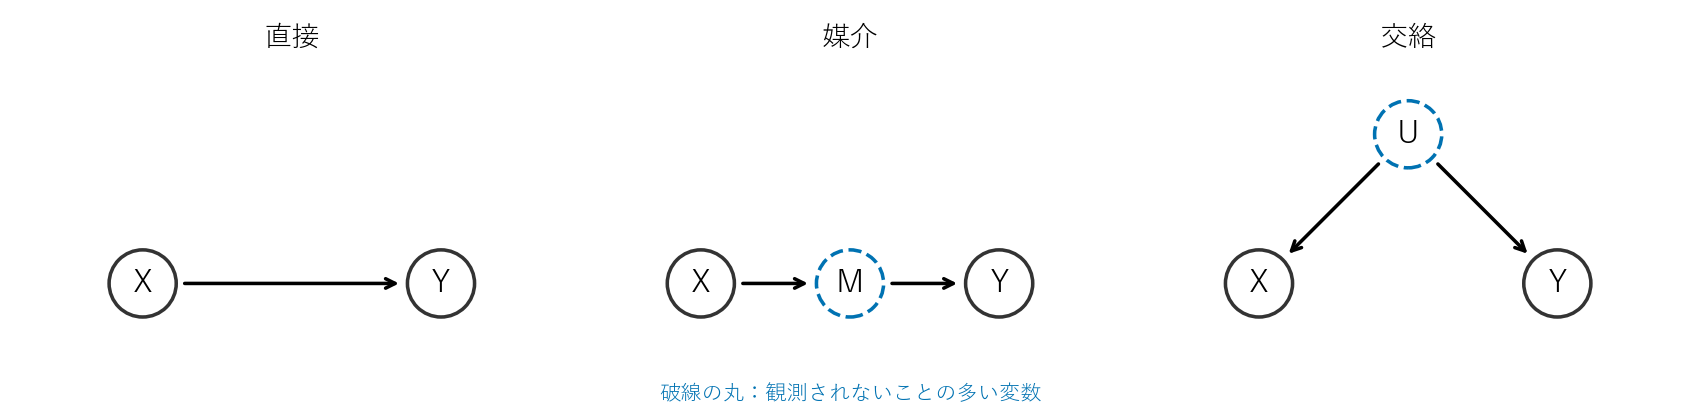
図1 直接作用・媒介・交絡の構造。 破線の丸は観測されない変数の例を示す。本記事で作成した概念図。
- 総効果:Xを介入で変えたときにYがどれだけ変わるか。すべての経路を通った効果である。
- 制御直接効果:Mを一定に固定したときに、Xの変化がYを変える分。
- 間接(媒介)効果:XがMを変え、そのMがYを変える経路を通る分。
媒介の図では、作用はMを通ってYに届く。これも因果の作用であり、Xを介入で変えればYは変わる。Mを観測しなくても総効果は存在する。ただし、XとYの間に直接の作用があるとは言えない。
交絡の図では、\(U\) は XとYの共通原因 である。Uで調整しなければXとYは関連して見えるが、Xを介入で変えてもYが動くとは限らない。
観測された二変数の関係だけから、この三つを一般に区別することはできない (3)。媒介による効果と、交絡による見かけの関連を取り違えると、実験で操作すべき対象まで取り違えうる。
ここでいう「直接」は、指定した変数の集合と時間分解能に対して直接という意味である。細胞を一つの状態変数として扱うモデルと、細胞内のタンパク質反応まで描いたモデルでは、同じ「直接のエッジ」でも意味が違う。
媒介変数を消去すると作用は「記憶」として残る
簡単な動的モデルで確かめる。\(x(t)\) を上流の細胞や入力、\(m(t)\) を観測しない代謝物、\(y(t)\) を下流の応答とする。
\[ \frac{dm}{dt}=a\,x(t)-\lambda\, m(t), \qquad \frac{dy}{dt}=b\,m(t)-\gamma\, y(t). \]
ここには xからyへの直接の項はない。作用はすべてmを経由する。それでもmの方程式を解けば
\[ m(t)=e^{-\lambda t}m(0)+a\int_0^t e^{-\lambda(t-s)}x(s)\,ds \]
であり、yの方程式は
\[ \frac{dy}{dt}=-\gamma\, y(t)+b\,e^{-\lambda t}m(0) +ab\int_0^t e^{-\lambda(t-s)}x(s)\,ds \]
となる。mを式から消しても、過去のxの履歴がyに影響する項は残る。 これはこの線形モデルからの代数的な帰結である。
代謝物の消失がxの変化より十分速く(\(\lambda\) がxの変化の速さより十分大きく)、初期の過渡が過ぎていれば(\(t \gg 1/\lambda\))、準定常近似として
\[ m(t)\approx\frac{a}{\lambda}\,x(t),\qquad \frac{dy}{dt}\approx\frac{ab}{\lambda}\,x(t)-\gamma\, y(t) \]
と書ける。この粗いモデルには、あたかも x → y の直接作用があるように見える。しかし係数 \(ab/\lambda\) は、産生・作用・消失をまとめた有効係数であり、分子間の直接の相互作用定数ではない。近似が成り立つかは、媒介の速さとxの変化の速さの比で決まる。観測間隔は、近似からのずれがデータで見えるかどうかを左右する。観測が粗いと、遅い媒介でも直接作用のように見えてしまう。
この形は薬理学にもある。準定常近似で残る \(dy/dt = (ab/\lambda)\,x - \gamma\,y\) は、入力が応答の産生を促す線形の間接反応モデルの形で、遅れは応答自身の消失(\(k_{out}\)、ここでは \(\gamma\))から生じる (4)。遅れのない直接効果モデルになるのは、\(\gamma\) も十分速いときだけである。媒介物 \(m\) の式は、薬物濃度から作用部位までの遅れを表す 効果コンパートメントモデル (5)と、遅れの形が同じである。ただし古典的な効果コンパートメントモデル では流入と消失の速度定数が同じ \(k_{e0}\) なので、\(k_{e0}\) を変えても遅れが変わるだけで定常の水準は変わらない。本記事のモデルは流入 \(a\) と消失 \(\lambda\) を独立に置いているので、\(\lambda\) を変えると定常の水準も変わる。入力と応答の関係が遅れによってループを描く現象は、ヒステリシスとして知られている。
合成計算例
上のモデルで合成データを作り、媒介物を観測しない人が二つのモデルを当てはめた場合を計算した。実験データではない。設定は \(a=b=1\)、\(\gamma=0.5\)/日、xは10日ごとに3日間高くなる既知の入力、各モデルの初期状態は入力xの初期値に対する定常状態とした。yは1日ごとに観測し、2%の対数正規の測定誤差を加えた。媒介物の消失速度 \(\lambda\) は、速い場合(10/日)と遅い場合(0.3/日)を比べた。\(\lambda\) は、媒介物の分解、他の菌による取り込み、系外への流出をまとめた速度である。「媒介物の除去を5倍に速める」介入は、例えば媒介物を分解する酵素を加えることにあたる。培養の希釈率を上げる操作は y も同時に薄めるので、この介入にはあたらない。
- 直接モデル:\(dy/dt = k\,x(t) - g\,y\)。媒介物を考えない。
- 2段モデル:観測しない区画を1つ入れた \(dm/dt = c\,x - r_1 m,\ dy/dt = m - r_2 y\)。構造は真の系と同じで、媒介物は観測しない。
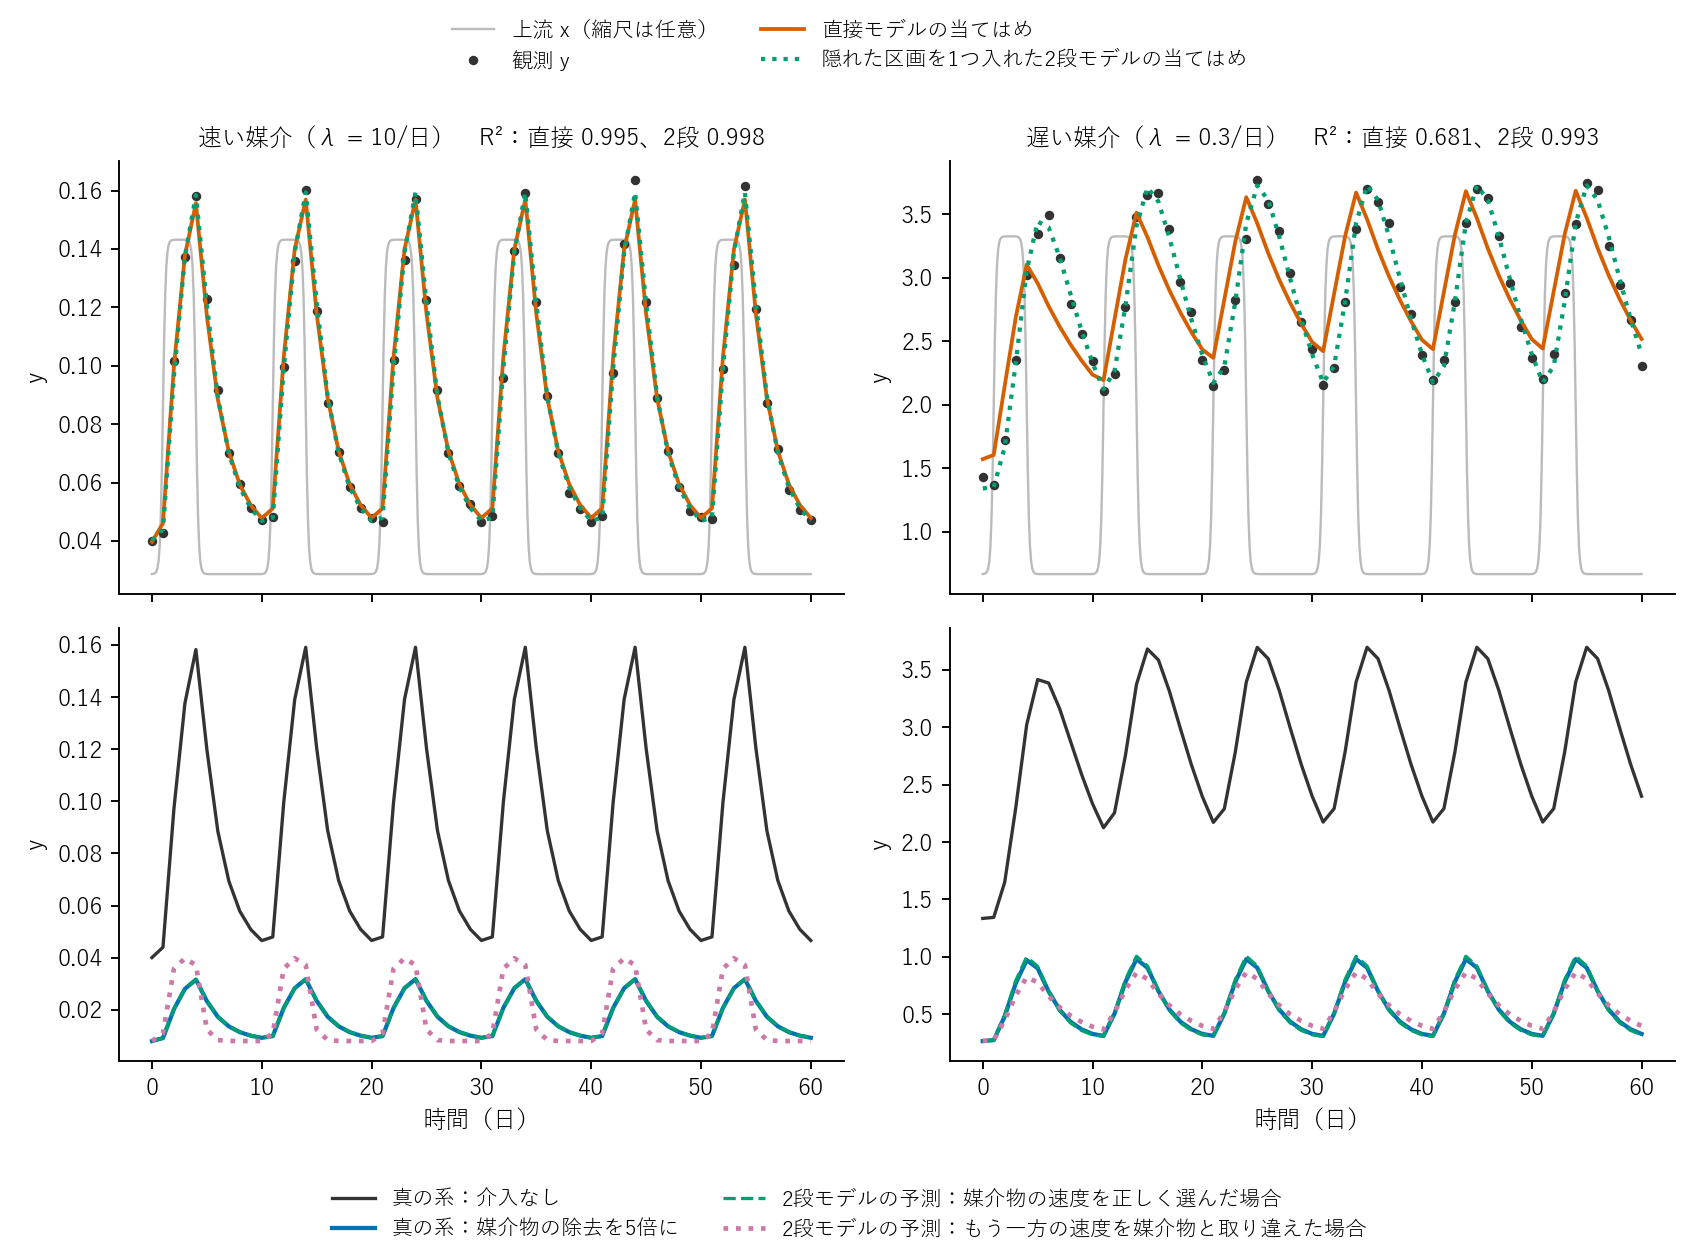
図2 合成応答への適合と媒介物への介入予測。 上段は直接モデルと二段モデルの適合、下段は媒介物の除去を5倍にした条件。速度の割当により予測の振れ幅が変わる。
表1 合成例における当てはまりと介入予測
| Metric | Fast mediator (λ = 10/day) | Slow mediator (λ = 0.3/day) |
|---|---|---|
| Direct-model fit, R² | 0.995 | 0.681 |
| Direct-model steady gain k/g; true ab/(λγ) in parentheses | 0.202 (0.200) | 6.85 (6.67) |
| Direct-model y removal g; true 0.5/day | 0.47 | 0.12 |
| Two-stage fit, R² | 0.998 | 0.993 |
| Two estimated rates; true | {0.50, 8.7} | {0.29, 0.54} |
| Mean under fivefold mediator removal: true / correct rate assignment / swapped assignment | 0.20 / 0.20 / 0.20 | 0.20 / 0.20 / 0.20 |
| Peak-to-trough amplitude under the same intervention: true / correct / swapped | 0.20 / 0.20 / 0.28 | 0.44 / 0.45 / 0.32 |
介入の効果は、最後の20日間の平均と、山から谷までの振れ幅を、介入しない場合との比で示した。「速度を正しく選んだ場合」は、真の値を知っているシミュレーションだからこそ選べるもので、実際のデータでは選べない。
表1と図2では、定常ゲイン、推定速度、速度の割当、介入の表現可能性を区別する。
直接モデルは、総ゲインは正しく取り出す。 速い媒介でも遅い媒介でも、直接モデルの定常ゲイン k/g は真の値 \(ab/(\lambda\gamma)\) に近かった。上流のxを一律に2倍にする介入の予測は、どちらの場合も真値と同じ2.00倍だった。ただし、これは系が線形で、xが外から与えられる(交絡がない)からであり、どんな線形モデルでも2.00倍になる。モデルが正しいことの証拠にはならない。
媒介が遅いと、その「記憶」は別の変数の誤ったパラメータとして現れる。 遅い媒介で、直接モデルは y の消失速度を真値の約4分の1(0.12/日)と推定した。媒介物に滞在する時間が y の消失時間に足し込まれ、入力に対する遅れを1段のモデルで再現しようとした結果である。当てはまりが悪い(R² 0.68)ことには気づけるが、それだけでは、どこが違うのかは分からない。
正しい構造でも、二つの速度の「どちらが媒介物のものか」はデータから決まらない。 2段モデルは、遅い媒介でもR² 0.993まで当てはまり、二つの速度を {0.29, 0.54}/日(真値 {0.3, 0.5})と推定した。しかし、この初期条件と既知入力の下では、yの時系列は二つの速度について対称である。二つを入れ替えても当てはめの曲線は同一だった(差は最大 \(2\times10^{-8}\))。どちらが代謝物の消失で、どちらが y 自身の消失かは、x と y だけからは識別できない(構造的に識別できない)。経口薬の薬物動態で、吸収速度と消失速度を入れ替えても、見かけの分布容積を調整すれば血中濃度の曲線が同じになる flip-flop と同じ種類の現象である。媒介物の除去を5倍にする介入の予測は、平均の水準では、どちらを選んでも真値の0.20倍に一致した。定常ゲインが二つの速度の積で決まるからである。一方、振れ幅は、正しく選べば0.45倍(真値0.44倍)、取り違えると0.32倍になった。
直接モデルは、媒介物への介入をそもそも表せない。 直接モデルには媒介物の速度にあたるパラメータがないので、この介入を書き込むことができない。準定常近似から「k は \(1/\lambda\) に比例する」という機序の知識を外から持ち込めば、速い媒介の場合は平均の水準で0.20倍を正しく予測できる。その知識はデータからではなく、機序の仮定から来ている。
つまり、隠れた媒介物があると、当てはまりの良いモデルは作れても、介入したい対象(ここでは媒介物の消失)に対応するパラメータが、どれかを観測データから決められないことがある。これを決めるには、媒介物そのものを測るか、媒介物に独立に介入する必要がある。
微生物での検討
Niehausらは、代謝物や老廃物といった相互作用の媒介物を明示的に含む微生物群集のモデルを作り、実験で制約した。相互作用が強いとき、共存を決めるのは促進と阻害の強さよりつながり方であり、媒介物の消費や分解が相互作用の強さを和らげて共存を促すことを示した (6)。媒介物の消失が他の菌の消費にも依存するなら、計算例の \(\lambda\) にあたる量は群集の組成で変わる。つまり、種から種への「有効なエッジ」の強さも、群集の組成によって変わる。
私が共著者として参加したSuzukiらの研究(2022)では、Niehausらのモデルにもとづく化学物質を介した相互作用のモデルと、種間の直接の相互作用だけのモデルから時系列を作り、5つのネットワーク推定法を比べた (7)。比べたのは、Pearson相関、Spearman相関、時間のずれを考える相関(LSA)、状態空間の再構成から因果の向きを見るCCM(決定論的な力学系を前提とする)、一般化Lotka–Volterraモデルを前提に相互作用を回帰で推定するLIMITSである。栄養資源の競争は、化学物質とは別に、全種の合計個体数が増えると各種の増殖が抑えられる項として、両方のモデルに同じ形で加えた条件(競争あり)と、加えない条件(競争なし)を比べた。データは過程にノイズを入れた合成の時系列で、観測誤差はなく、1系列100点、存在量の多い上位5種のネットワークを評価した。
正解として使ったのは、化学物質を介した場合も含めて、種から種への有効な相互作用(媒介物を通じた影響をまとめた行列)である。つまり、このベンチマークは「有効なエッジを検出できるか」を評価したもので、「媒介物を特定できるか」「直接の作用と媒介を区別できるか」を評価したものではない。媒介変数の消去で得た有効係数と同じ構造である。
表2 微生物モデルでの相互作用検出
| Condition | Result in Suzuki et al. (2022) |
|---|---|
| With nutrient competition | LIMITS and CCM detected interactions, with ROC-AUC higher in that order. Three correlation methods had ROC-AUC around 0.5, close to chance. |
| Chemical-mediated versus direct interactions with competition | LIMITS had lower ROC-AUC for chemical mediation, but no significant precision difference. CCM's difference was small and nonsignificant; its overall performance was below LIMITS. |
| Without nutrient competition | Interaction detection was difficult for every method. |
この結果を「CCMなら隠れた媒介変数を見抜ける」と読むべきではない。特定の数理モデルと条件でのベンチマークであり、実測された微生物群集で直接作用と間接作用を区別できると示したわけではない。推定法が想定する相互作用の形と、実際の生物の作用の形がずれると、推定したネットワークのエッジの意味も変わる。
これに対し、Jansmaらは2026年に、細菌と代謝物の両方を状態変数に持つ常微分方程式のネットワークを、ベイズ推定で時系列から推定する枠組みを報告した (8)。ただし、これは代謝物の時系列も測っていることを前提にした方法で、隠れた媒介物を推定するものではない。検証も合成データで行われている。媒介物を「測って、モデルに入れる」方向の試みと読むのがよい。
RNAだけの遺伝子調節ネットワークにも同じ構造がある
遺伝子AのmRNAが増え、後から遺伝子BのmRNAが増える。ここから、AがBを直接転写制御したと結論できるだろうか。
直接の転写制御でも、作用は必ずAのタンパク質を経由する。だから「タンパク質を経由するか」は問題ではない。区別すべきは、BがAの直接の標的か、A以外の調節因子を経た二次的な標的かである。シグナル伝達では、タンパク質の量より、リン酸化などの活性状態が作用を決めることも多い。RNA-seqは、これらを測っていない。RNA上の「A → B」は、RNAという観測層に映した影響関係であって、Aのタンパク質がBの調節領域に結合した証拠ではない (1)。
測る層を増やす研究は進んでいる。2025年のHALOは、単一細胞データを使ったクロマチンアクセシビリティと遺伝子発現を統合し、二つの層が連動して変わる成分と独立に変わる成分を分ける枠組みを報告した (9)。2026年のShinらの総説も、細胞型ごとの違い、動態、摂動を扱うGRN推定には未解決の課題が多いと整理している (10)。
摂動のデータは何を足すか。Perturb-seqのようにAを操作して全遺伝子の応答を測れば、Aの総効果は測れる。しかし、それがAからBへの直接のエッジなのか、別の遺伝子を経た媒介なのかは、総効果だけでは決まらない。CausalBenchは、CRISPRiによる大規模なsingle-cell摂動データでネットワーク推定法を評価した。最初の評価では、既存の手法のうち介入データを使うものが、観察データだけを使うものを上回らなかった。その後に公開の競技で募集した手法は、すべて介入データを使うもので、評価の上位の多くを占めた (11)。ただし、この評価には正解のネットワークがなく、生物学的・統計的な代理指標で測っている。摂動への発現応答を予測する方法についても、11の大規模摂動データで比べたベンチマークで、単純な基準を上回ることはまれだったと報告されている (12)。摂動データは役に立つが、使い方と評価のしかたに強く依存する。
時系列から未観測の媒介を推定できるか
Mohiuddinらは2025年に、二つの個体の時系列だけから、その間に見えない仲介者がいるかを判定できるかを調べた (13)。時間遅れを変えながら移動エントロピーの修正版を計算すると、直接の相互作用では遅れとともに単調に減り、間接の相互作用ではその傾向から外れる。この特徴を、集団運動の標準的なモデル(修正Vicsekモデルとランジュバン動力学)で示した。
これは「直接の相互作用なら、相互作用の時間尺度より長い遅れでは影響が減る」という、著者ら自身が作業仮説と明記した前提の上に立つ方法である。著者らは今後の課題として、相互作用の時間尺度をデータから推定する必要があること、ノイズが小さい場合や結合が弱い場合の例外、サンプリングの頻度への依存、そして一つの個体が他の二つを共通に駆動する場合に、直接と間接の判定が一貫しなくなりうることを挙げている。最後の点は、この方法が媒介と交絡を区別できるとは示されていないことを意味し、直接効果・媒介・交絡の区別に直結する。
Dimitrovらの2026年の総説は、単一細胞データを使った機械学習の方法を、表現学習、因果推論、機序の発見、摂動効果の外挿といったモデル化の考え方、前提、目的ごとに整理している (14)。どのモデルを使うかより先に、何を観測し、何を外挿し、どんな因果の仮定を置いたかを明確にすべきだ、という本記事の論点とも重なる。
考察
創薬では、薬が結合する標的の状態変化が薬効を媒介することがある。オミクスやAIで描いた「遺伝子・タンパク質のネットワーク」のエッジは、測った層に映した有効係数であり、そのエッジを薬で操作すれば同じ作用が得られるとは限らない。
投与から薬効までも同じ構造である。
投与 D → 血中濃度 C → 組織内濃度 → 標的の占有率 R → シグナル → 薬効 Y
血中濃度と薬効しか測っていなければ、曝露–反応モデルは作れても、標的の占有が実際の媒介経路だと特定したことにはならない。血中濃度から薬効への係数は、組織への移行、標的への結合、シグナル伝達をまとめた有効係数になる。しかも標的の占有は飽和するので、その係数は濃度によって変わる。組織への移行や標的の量が違う条件、例えば投与経路の違い、組織移行性の違い、標的の発現量や標的を介した消失(TMDD)の違いには、その係数をそのまま使えない。
観察データでは、媒介とは別に交絡にも注意が要る。Daiらの総説は、抗体医薬の曝露–反応の関連を三つの成分に分けて整理している (15)。曝露そのものによる成分、病態が重い患者ほどクリアランスが高く曝露が低くなることによる成分(交絡)、治療が効くとクリアランスが下がることによる成分(逆向きの因果)である。後の二つを切り分ける対策として、初回投与の曝露を使うことや、複数の用量を無作為に割り付けることが挙げられている。
必要なのは、全分子を無条件に測ることではない。競合する機序の仮説を区別できる情報を増やすことである。
表3 介入の問いと識別に関係する情報
| Question | Informative observations or experiments | Remaining limitation |
|---|---|---|
| Direct or mediated action? | Measure shortly after an acute perturbation at resolution finer than mediation; distinguish primary and secondary responses. Add translation-blocked conditions, nascent RNA or regulatory-region binding measurements such as ChIP or CUT&RUN. | Unmeasured pathways may remain even within a measured layer. |
| Does changing X change Y? | Randomize interventions on X; verify specificity, including siRNA off-target effects or inhibitors acting on multiple targets. | A total effect does not identify its mediating path. |
| Is a particular M necessary? | Combine X and M interventions; test whether modifying M removes X's effect, or supplying M bypasses X manipulation. | M may act through other routes; floor effects can conceal differences. |
| Does the drug engage its target and produce effects through it? | Measure target engagement, genetic/compound concordance, loss of effect in binding-resistant mutants and temporal changes from proximal to distal biomarkers. | Movement of a proximal marker does not validate the entire efficacy pathway. |
| Which mechanistic model is appropriate? | Experiment where competing predictions differ: measure the mediator in the synthetic example, or choose inputs revealing different dynamic amplitudes. | Feasibility and parameter identifiability still matter. |
標的の妥当性については、ヒトの遺伝学的な証拠が、介入の結果を前もって示す独立の情報源になる。遺伝学的な裏付けのある標的は、臨床開発の成功確率が高いと報告されている (16)。これも、観察した関連とは別の情報で機序の仮説を確かめる方法の一つである。ただし、生まれつきの遺伝的な変化と、薬による急性の阻害は同じではなく、一つの遺伝子が複数の経路に関わること(多面発現)もある。
媒介効果を定量化したいときは、さらに厳しい条件が要る。VanderWeeleの総説は、直接効果と間接効果を因果的に解釈するために、曝露と結果、媒介変数と結果、曝露と媒介変数のそれぞれの間に測っていない交絡がないこと、そして曝露の影響を受けた交絡因子がないことが必要だと整理し、その感度解析を紹介している (17)。上で触れた、病態がクリアランスと薬効の両方に影響する状況は、この条件の違反にあたる。
結論
未観測の媒介変数を省いたモデルが、いつも無価値になるわけではない。観測できる変数への総効果の予測なら、媒介の経路をまとめた有効モデルで十分な場合がある。計算例でも、直接モデルは総ゲインを正しく取り出した。
しかし、その有効なエッジを分子の直接作用だと読むことと、そのエッジを操作すれば同じ作用が再現できると考えることは別である。計算例では、構造の正しいモデルを当てはめても、二つの速度のどちらが媒介物のものかはデータから決まらなかった。介入したい対象に対応するパラメータを特定するには、媒介物を測るか、媒介物に独立に介入する必要がある。
媒介物を含まない直接モデルでは、その媒介物自体を操作する実験の応答は計算できない。観測上のエッジがよく当てはまることと、そのエッジに対応する介入が定義されていることは異なる。
データとコードの公開状況
再実行資料ZIPを展開し、Python 3.11以上で、展開先のフォルダから以下を実行する。確認した版は requirements.txt に固定した。実行時間は環境によって約15分である。
python -m pip install -r requirements.txt
python mediator_demo.py
計算コードは、results/summary.json、results/fits.csv、二つの図を生成する。乱数シードは固定している。どちらのモデルも複数の初期値から当てはめ、最も残差の小さい解を使った。直接モデルは9通りすべての初期値が同じ解に達した。2段モデルは、遅い媒介では8通りすべてが同じ解に達したが、速い媒介では8通りのうち1通りだけだった。速い媒介の速度(推定8.7、真値10)は1日ごとの観測より速く、データからの情報が少ない。
系は線形で、媒介物は一つ、入力xは既知の周期的な信号とした。非線形の系(例えば飽和)、媒介物が複数ある場合、フィードバックがある場合、交絡がある場合は扱っていない。介入の効果は、最後の20日間の平均と振れ幅だけで比べた。数値はこの設定での例示であり、特定の微生物や薬の推定値ではない。
参照
- Kernfeld E. Coping with missing data in biological network modeling [Internet]. 2020 Mar 10 [cited 2026 Oct 28]. Original post.
- Kumakura D. Does a model that predicts well understand the mechanism? Separating prediction from mechanistic inference [Internet; technical note]. 2026 Oct 24. English article.
- Runge J, Bathiany S, Bollt E, Camps-Valls G, Coumou D, Deyle E, et al. Inferring causation from time series in Earth system sciences. Nature Communications. 2019;10(1):2553. doi:10.1038/s41467-019-10105-3.
- Dayneka NL, Garg V, Jusko WJ. Comparison of four basic models of indirect pharmacodynamic responses. Journal of Pharmacokinetics and Biopharmaceutics. 1993;21(4):457–478. doi:10.1007/BF01061691.
- Sheiner LB, Stanski DR, Vozeh S, Miller RD, Ham J. Simultaneous modeling of pharmacokinetics and pharmacodynamics: Application to d-tubocurarine. Clinical Pharmacology & Therapeutics. 1979;25(3):358–371. doi:10.1002/cpt1979253358.
- Niehaus L, Boland I, Liu M, Chen K, Fu D, Henckel C, et al. Microbial coexistence through chemical-mediated interactions. Nature Communications. 2019;10(1):2052. doi:10.1038/s41467-019-10062-x.
- Suzuki K, Abe MS, Kumakura D, Nakaoka S, Fujiwara F, Miyamoto H, et al. Chemical-Mediated Microbial Interactions Can Reduce the Effectiveness of Time-Series-Based Inference of Ecological Interaction Networks. International Journal of Environmental Research and Public Health. 2022;19(3):1228. doi:10.3390/ijerph19031228.
- Jansma J, Landi P, Hui C. Bayesian inference captures metabolite–bacteria interactions in a microbial community. ISME Communications. 2026;6(1):ycag066. doi:10.1093/ismeco/ycag066.
- Mao H, Jia M, Di M, Valenzi E, Cai XT, Lafyatis R, et al. HALO: hierarchical causal modeling for single cell multi-omics data. Nature Communications. 2025;16(1):8892. doi:10.1038/s41467-025-63921-1.
- Shin J, Halberg-Spencer S, Liu Y, Hazra S, Lee EDI, Roy S. Modeling Dynamics, Cell Type Specificity, and Perturbations in Gene Regulatory Networks. Annual Review of Genomics and Human Genetics. 2026;27(1):103–129. doi:10.1146/annurev-genom-120922-103729.
- Chevalley M, Roohani YH, Mehrjou A, Leskovec J, Schwab P. A large-scale benchmark for network inference from single-cell perturbation data. Communications Biology. 2025;8(1):412. doi:10.1038/s42003-025-07764-y.
- Kernfeld E, Yang Y, Weinstock JS, Battle A, Cahan P. A comparison of computational methods for expression forecasting. Genome Biology. 2025;26(1):388. doi:10.1186/s13059-025-03840-y.
- Mohiuddin M, Basak US, Hossain MM, Sattari S, Toda M, Komatsuzaki T. Detecting existence of a hidden mediator between a pair of individual time series. Scientific Reports. 2025;15(1):21610. doi:10.1038/s41598-025-04436-z.
- Dimitrov D, Schrod S, Rohbeck M, Stegle O. Interpretation, extrapolation and perturbation of single cells. Nature Reviews Genetics. 2026;27(5):349–370. doi:10.1038/s41576-025-00920-4.
- Dai HI, Vugmeyster Y, Mangal N. Characterizing Exposure–Response Relationship for Therapeutic Monoclonal Antibodies in Immuno-Oncology and Beyond: Challenges, Perspectives, and Prospects. Clinical Pharmacology & Therapeutics. 2020;108(6):1156–1170. doi:10.1002/cpt.1953.
- Minikel EV, Painter JL, Dong CC, Nelson MR. Refining the impact of genetic evidence on clinical success. Nature. 2024;629(8012):624–629. doi:10.1038/s41586-024-07316-0.
- VanderWeele TJ. Mediation Analysis: A Practitioner's Guide. Annual Review of Public Health. 2016;37(1):17–32. doi:10.1146/annurev-publhealth-032315-021402.