M2マクロファージを一括りにすると何を見落とすか
最新のマクロファージ総説を起点に、2ドナー・21,229細胞の公開RNAデータを再集計する。M2aとM2cをまとめると消える情報と、介入評価に残したい機能を考える。
On this page
「M2マクロファージが減った」。がんの免疫を扱う研究なら、よい変化に見えるかもしれない。免疫を抑える細胞が減ったのだから、T細胞は働きやすくなる。そう話を進めたくなる。
しかし、そのM2は何をしていた細胞なのだろう。
2026年10月16日公開のImmunityのPerspective、Embracing macrophage complexity for research and translationは、マクロファージを固定的な型、二値の活性化状態、単一マーカーで捉える枠組みを見直している。要旨によれば、細胞の状態は発生由来、組織内の居場所、エピジェネティックな履歴、局所環境、疾患に関連するシグナルから生じる。複数の遺伝子プログラムの活動を重み付きで組み合わせて記述し、治療では疾患に関連する状態を定義し、そこへ到達できる表面分子を見つけ、基盤のプログラムを書き換える、という提案だ。新薬の効果を検証した試験ではなく、研究と介入をどう組み立てるかを論じた総説である。ここでは公開された要旨だけを確認し、本文は読んでいない。総説に関する以下の記述は要旨の範囲に限る (1)。
M1/M2の限界そのものは新発見ではない。2014年の実験ガイドラインでも、細胞の由来と刺激を明記するよう勧めていた (2)。同じ年に、M1/M2の二分法は見直しが必要だとする総説 (3)と、299のヒトマクロファージのトランスクリプトームからM1/M2の二極を超える活性化状態のスペクトルを示した研究 (4)も出ている。総説の意義は、「分類を増やそう」で止まらず、何を残し、何を変えたいのかを介入の問いにする点にある、と要旨を読んで解釈している。この解釈は本文で確かめたものではない。
そこで、公開されたヒトマクロファージの単一細胞RNAデータを再集計した。M2という同じ箱に入る二つの刺激条件を比べ、箱に戻したときに消える情報を調べる。同時に、遺伝子パネルの得点を機能の代理として読めるかを、原著の機能測定と照らして検討する。
同じM2でも刺激は違う
使ったのはGSE199378。健常者2人の血液由来単球をマクロファージへ分化させ、次の刺激を与えたデータだ。原著は2022年のModakらの研究であり、2026年の総説が新たに測定したものではない。Modakらの主題は、CD206陽性のマクロファージが腫瘍抗原を交差提示し、抗腫瘍免疫に寄与するかどうかだった (5)。
表1. 刺激条件とドナー別の細胞数。
| Original label used here | Stimulus | Donor 1 cells | Donor 2 cells |
|---|---|---|---|
| M1 | LPS + IFNγ | 3,884 | 4,537 |
| M2a | IL-4 + IL-13 | 1,407 | 4,756 |
| M2c | IL-10 | 3,631 | 3,014 |
合計21,229細胞、独立したドナーは2人。GEOの記載では、マクロファージコロニー刺激因子(M-CSF)で6日間分化させた後、24時間刺激している。LPSはリポ多糖、IFNγはインターフェロンγ、ILはインターロイキンを指す。原著の方法欄でも、単一細胞RNA解析用のマクロファージは分化サイトカインの添加から24時間後に回収されたと記される。一方、機能実験用のマクロファージは、M-CSFで5日間分化させた後に48時間刺激し、第7日に回収された (5)。RNAと機能実験では刺激の長さが違うため、同じ時点の測定として結び付けない。
この解析では、元データのQCとscran正規化 (6)後のlog1p発現値を使った。原著は6サンプルを連結して一括で正規化し、UMAP上で2つの複製が3条件ごとにまとまったと述べている (5)。再度のクラスタリングやバッチ補正はしていない。多数の細胞があることと、多数のドナーで確かめたことは違う。同じ個体の細胞は統計的に独立ではなく、細胞を単位にした検定は偽陽性を増やす (7, 8)。そのため、本記事では細胞単位のp値を付けず、ドナー2人という単位を前提に記述する。
二つの条件を一つの点にしない
発現行列を開く前に、26遺伝子からなる六つの小さなパネルを決めた。IFN関連、抗原処理、共刺激リガンド、チェックポイントリガンド、type 2関連、取り込み受容体である。
これは私が比較用に選んだパネルで、2026年の総説のプログラム一覧を再現したものではない。データから新しい制御回路を同定したわけでもなく、各パネルが独立に動くと仮定してもいない。共刺激リガンド、チェックポイントリガンド、取り込み受容体のパネルは、Modakらが論じた受容体遺伝子(CD86、ICOSLG、CD274、PDCD1LG2、MRC1、CD163など)と重なる (5)。行列を開く前の選択ではあるが、原著の報告を知ったうえで選んでいるため、これらの差は独立した発見ではなく、同じデータの再表現である。type 2関連のパネルは、IL-4とIL-13を与えた条件で高くなると想定して選んだ遺伝子であり、その条件を区別できることは事前に想定された結果であり、独立した機序の発見や機能差の証拠にはならない。ただし、期待した発現差が実測で得られるかまでが定義から決まるわけではない。
表2. 事前に選択した比較用遺伝子パネル。
| Panel | Genes used |
|---|---|
| IFN-related | STAT1, IRF1, GBP1, CXCL9, CXCL10, IDO1 |
| Antigen processing | HLA-A, HLA-B, B2M, TAP1, TAP2, PSMB8 |
| Costimulatory ligands | CD80, CD86, ICOSLG |
| Checkpoint ligands | CD274, PDCD1LG2 |
| Type 2-related | CCL17, CCL18, CCL22, ALOX15, TGM2 |
| Uptake receptors | MRC1, CD163, MERTK, MSR1 |
各ドナー・刺激条件で遺伝子の平均log1p発現を計算し、六つの標本平均を等しい重みで使って、遺伝子ごとに標準化した。そのzスコアをパネル内で平均する。細胞数の多い標本だけに基準を引っ張らせないためだ。
\[ S_{ds,P}=\frac{1}{|P|}\sum_{g\in P}\frac{\bar{x}_{ds,g}-\mu_g}{\sigma_g} \]
\(d\)はドナー、\(s\)は刺激条件。\(\mu_g\)と\(\sigma_g\)は六つの標本平均の平均と標準偏差で、標準偏差の分母は6とした。ゼロはこのデータの平均であり、機能が働いていないという意味ではない。また、全標本で尺度を作った記述的な図なので、未知ドナーへの予測性能とは呼ばない。さらに、このz尺度はM1も含む六標本の構成に依存する。M1とM2群の差が大きい遺伝子では、それが分母の標準偏差を大きくし、M2a–M2c差は相対的に小さく見える。以下の「近い」はこの標準化とパネル内平均の上での記述であり、機能的な同等性でも、M1を除いた集団で不変な距離でもない。
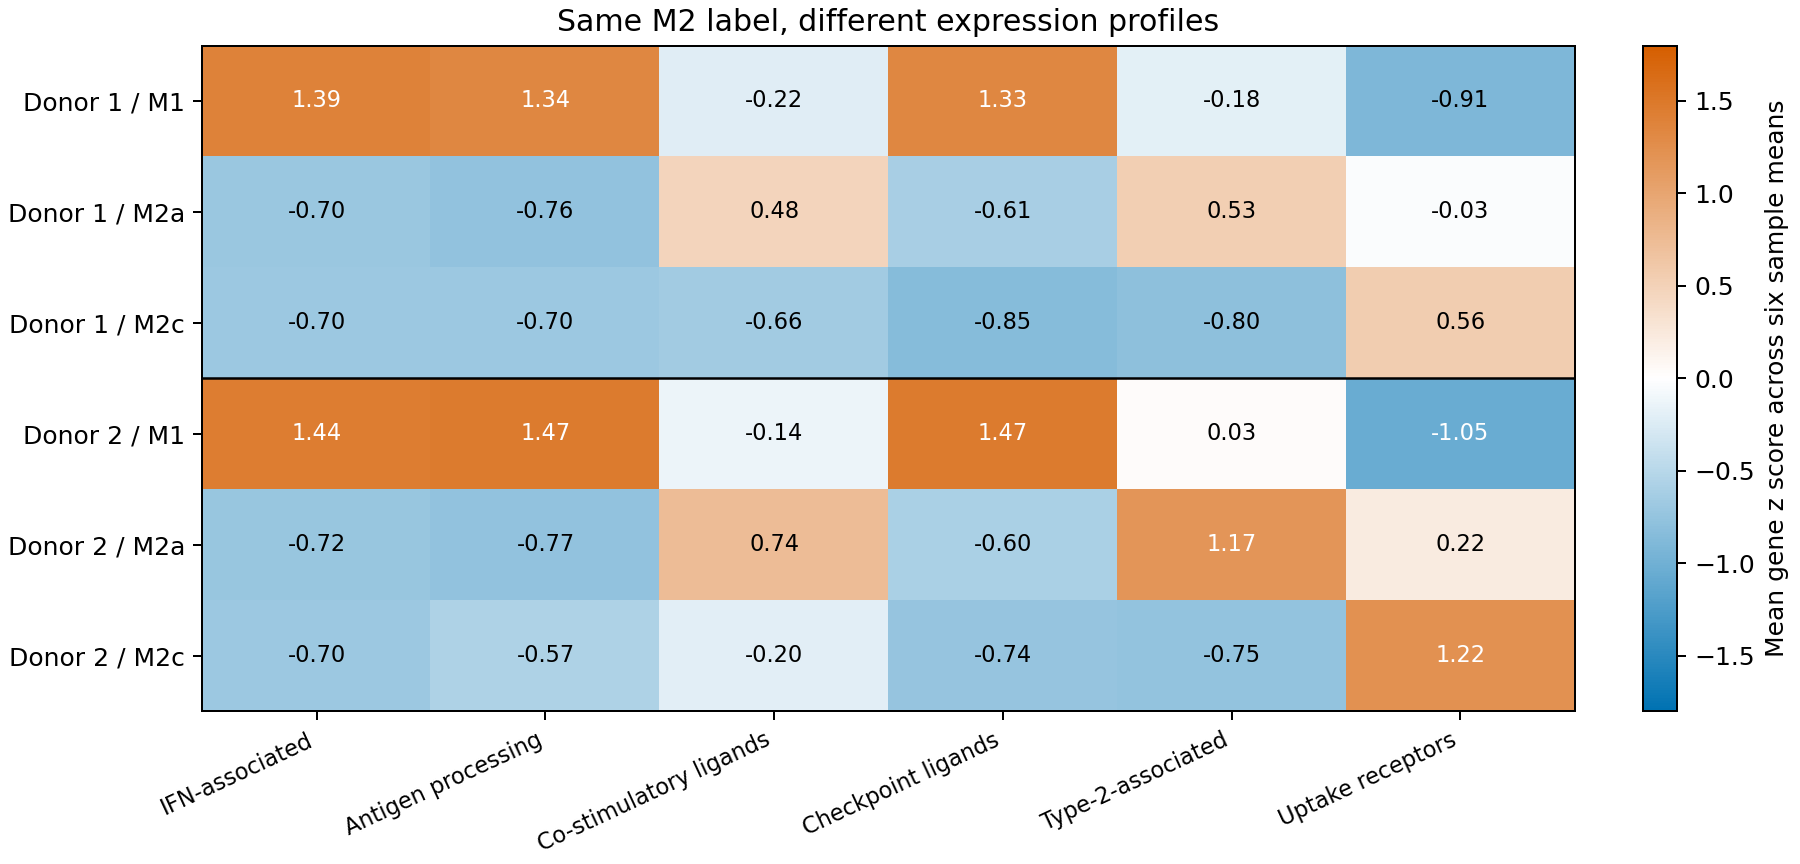
図1. 2ドナー・3刺激条件のパネル平均zスコア。六標本を等しい重みで標準化しており、機能の絶対活性ではない。
M2aからM2cを引くと、共刺激リガンドパネルはドナー1で1.14、ドナー2で0.95高かった。type 2関連も1.33、1.92高い。一方、取り込み受容体パネルは−0.59、−1.01だった。M2aのほうが一様に「活性化」しているという配置ではない。
チェックポイントリガンドもM2a側で0.23、0.14高い。共刺激に関わるRNAが高いことと、抑制に関わるRNAが低いことは、同義ではなかった。ここから抗腫瘍効果の正負を決めるのは無理がある。Modakらは、M2aがM1よりPD-L1とPD-L2の発現が低いと報告している (5)。本データでもチェックポイントリガンドパネルはM1で1.33と1.47、M2aで−0.61と−0.60であり、この向きと一致する。M2cに対しては、M2aがわずかに高い。
IFN関連、抗原処理、チェックポイントリガンドの三つでは、M2aとM2cの差(絶対値で0.0〜0.23)が、M2aとM1の差(約1.9〜2.2)よりはるかに小さい。この三軸では、M2という括りは大きな近似として成り立つ。M2a–M2cの差が相対的に大きかったのは、共刺激、type 2、取り込み受容体の三軸である。他の軸にも小さな差は残る。M2という括りが見落とすものは、見る軸によって決まる。
パネルから遺伝子を一つずつ外す感度分析では、共刺激、チェックポイント、type 2、取り込み受容体の差の向きは全通りで保たれた。IFN関連は差が小さく、12通り中2通りで向きが反転した。このデータで小さな差の符号まで強調する理由はない。標準化前の遺伝子平均や検出割合も配布表に残した。
M2の割合が同じでも中身は変わる
次に、各ドナーのM2aとM2cを、仮に一つのM2集団として混ぜて考える。M2aの割合を\(p\)とすると、平均パネルスコアは、
\[ S_{\mathrm{M2}}(p)=pS_{\mathrm{M2a}}+(1-p)S_{\mathrm{M2c}} \]
となる。これは既に観測された二条件の静的な重み付けだ。薬で細胞を変化させた実験でも、時間発展を推定したモデルでもない。
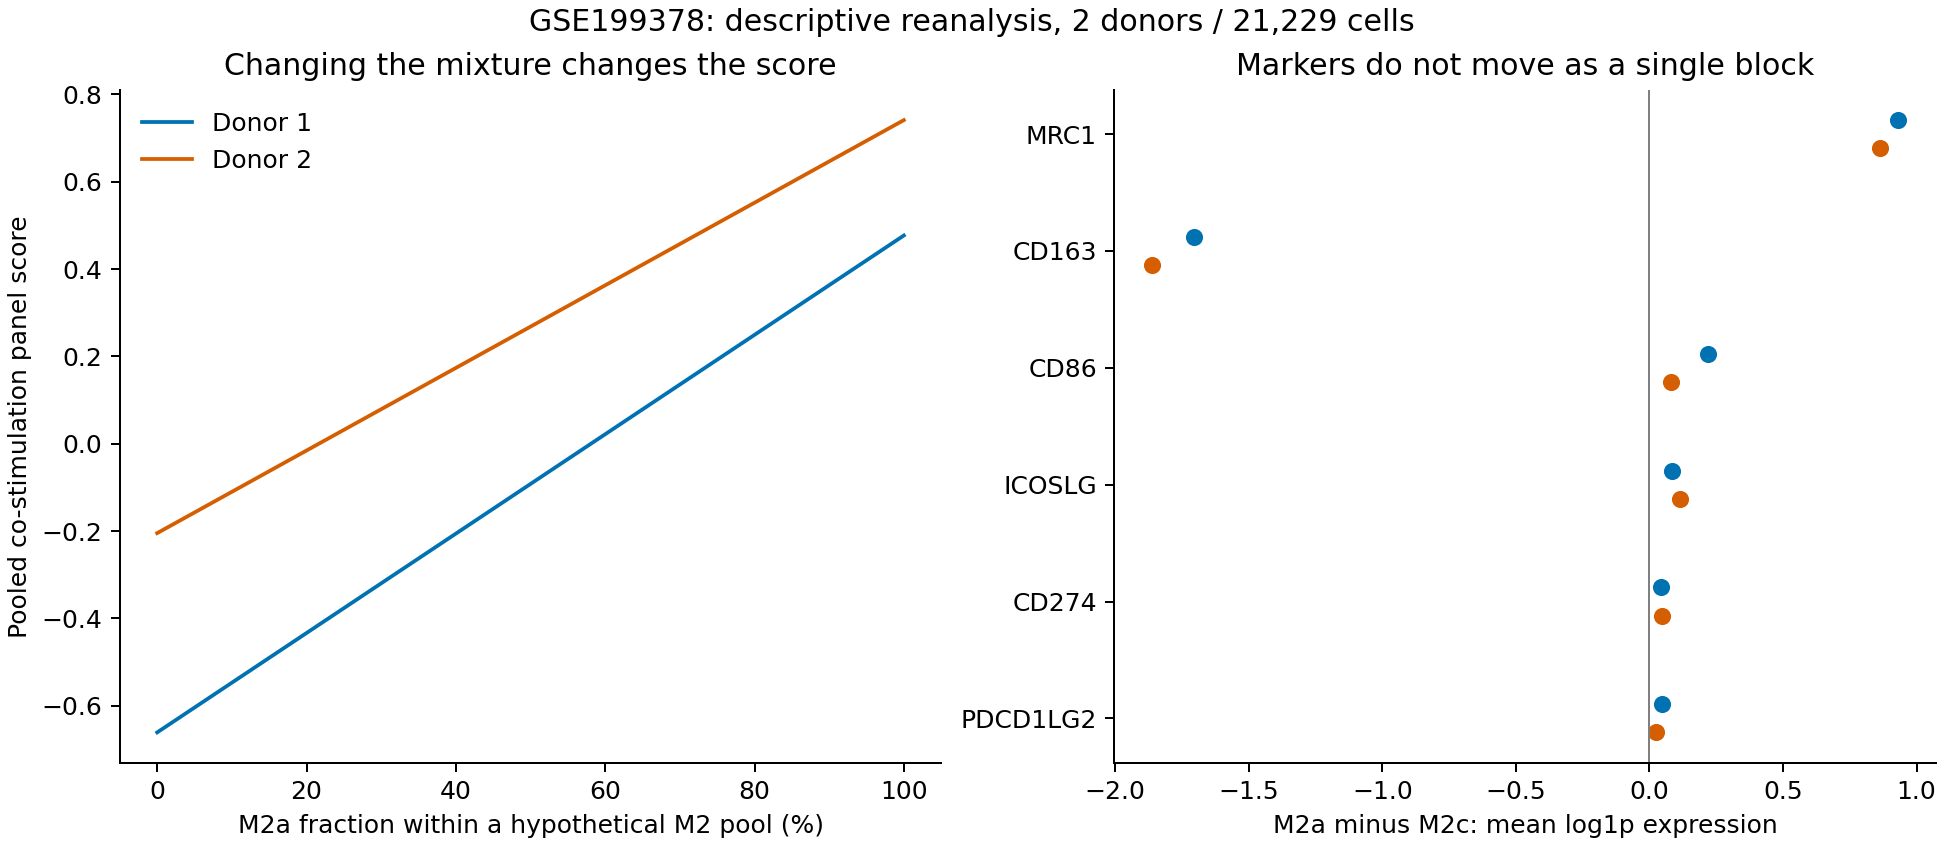
図2. 左は観測したM2aとM2cの静的な再重み付け。右はドナー別の遺伝子平均の差。細胞状態の遷移や介入効果を推定した図ではない。
この仮想プールの細胞は、どの\(p\)でも全てM2である。それでも共刺激リガンドスコアは、組成だけでドナー1では1.14、ドナー2では0.95動く。これは式の帰結であり、\(p\)を0から1まで動かしたときの変化幅が二条件の差に等しいというだけである。データが示すのは二条件の差そのものであって、実際の組織で\(p\)がどの範囲で動くかは分からない。「M2の割合に変化なし」と記録していたら、この違いは残らない。
右図のMRC1はCD206をコードする遺伝子、CD163は別の受容体だ。両方ともM2の説明に登場するが、この二条件では差の向きが逆になる。まとめた取り込み受容体パネルも便利ではあるものの、単一マーカーの違いを全て保存してくれるわけではない。ラベルをパネルに置き換えれば解決、とはいかない。
実際の治療前後では、構成比の変化に加え、同じ状態に属する細胞の発現も変わる。両者を区別するには、状態の定義を保った比較や追跡可能な実験が必要になる。今回の別々の刺激条件の横断測定から、M2cがM2aへ移ったとは言えない。
RNAの外に機能の測定を置く
元の2022年論文は、発現だけでなく抗原の交差提示も調べている。取り込んだ抗原をMHCクラスIを介してT細胞に見せる過程だ。可溶性の長鎖TyrDペプチドを使う条件では、M2aはM1やM2cより強い交差提示を示した。TyrD/HLA-A2複合体を持つ細胞の割合は、M2aで13%±3.9%(n = 4〜5ドナー、平均±SEM)、M1で6.2%±1.4%、M2cで2.6%±1.3%だった。TyrD特異的T58細胞のIFNγ産生も、M2aとの共培養で467±79.9 pg/mL、M1で109±15.6 pg/mL、M2cで110±22.3 pg/mLだった(n = 3〜4ドナー)。一方、紫外線でアポトーシスを誘導した黒色腫細胞株COLO829に由来する抗原の条件では、どのサブセットでもT58細胞のIFNγ産生は対照と差がなく、定量下限付近の約15 pg/mL以下だった(n = 4ドナー)。これらは原著のFigure 4の測定である (5)。
この条件依存性は記述に残す必要がある。「M2aは抗腫瘍的」と新しいラベルを貼って終えるのでは、元の問題を繰り返す。どの形の抗原を取り込ませ、どの提示過程とT細胞応答を測ったかを、結果と一緒に示さなければならない。今回のRNAデータの2ドナーは、原著の機能実験のドナー数でもない。RNAの差から、機能差の大きさを回帰した解析ではない。
原著は取り込みも測っている。蛍光標識したTyrD長鎖ペプチドは三つのサブセットすべてが効率よく取り込み、M2aは統合蛍光強度がM1やM2cより低かった。にもかかわらず、交差提示はM2aで最も強かった。アポトーシス細胞の取り込みでは、M2aとM2cがM1より統合蛍光強度が高かったが、この抗原に対するT細胞応答は検出されなかった (5)。RNAの取り込み受容体パネルはM2c、M2a、M1の順に高く(両ドナーで同じ順)、この順序は取り込み強度(M2aが最低)とも、交差提示の順序(M2aが最強)とも対応しなかった。取り込みの量、提示の効率、T細胞応答は、同じ向きに並ばない。
表面マーカーは介入の入口にはなりうるが、それを持つ細胞の働きがすべて同じとは限らない。今回のRNAの2ドナーから、細胞数の変化、状態変化、抗原提示機能の変化を定量的に分離したわけではない。M1/M2という名前の変化から、残る機能と失われる機能は決まらない。また原著の抗腫瘍に関する結論は、TCGAでの発現と生存の関連や、マウス腫瘍モデルでの比較に基づいており、4〜7匹ずつの群を比べた関連である。介入による因果の確認ではない (5)。
考察
M2という括りが何を見落とすかは、見る軸で答えが変わった。IFN関連、抗原処理、チェックポイントリガンドでは、M2aとM2cの差はM1との差よりはるかに小さい。共刺激、type 2、取り込み受容体では差が大きく、符号も一定ではない。一つのM2ラベルでは、これらの差を割合へ潰すことになる。ただし、パネルの差の一部は刺激に対する応答遺伝子の違いであり、機能の違いを意味しない。原著は交差提示と取り込みなどの機能を測っているが、その実験を本記事のRNAスコアと同一標本の対応測定として扱うことはできない。
これが、総説の枠組みの読み方を次のように変える。総説の要旨が述べる、プログラムの重み付き組合せでの記述は、本データでも自然に当てはまる。同じM2の中で、軸ごとに二条件の近さが違うからだ。一方で、どのプログラムを選ぶかという設計そのものが記述の結果を左右する。本記事の六つのパネルは、一部が原著で論じられた遺伝子から、一部が刺激への応答を想定した遺伝子から選ばれており、選び方次第でM2aとM2cが近くも遠くも見える。プログラム記述を介入の評価に使うなら、プログラムの定義と、それを機能の測定に結び付ける根拠を併せて示す必要がある。
関連する主張の読み方にも関わる。「M2が減った」という報告は、何で、どの培養条件や組織で定義したM2なのかを抜きに、抗腫瘍的な変化とは読めない。割合の変化は、組成の変化と状態内の発現の変化のどちらも含みうる。今回の横断データは両者を分けられない。
パネルのスコアと機能の関係を推定できない主な理由は、単に標本数が小さいことだけではなく、RNAと機能が同じドナー・時点の対応データとして揃っていないことにある。条件ごとの平均順位を照合しても、あるドナーのスコアからそのドナーの交差提示を予測する関係は検証できない。
限界
この解析は、二つの健常者由来の培養系と三刺激条件の記述である。未刺激M0、組織内の細胞、用量・時間系列は含まれず、ドナー全般への一般化、治療効果、毒性、遷移速度は推定していない。細胞単位のp値や、母集団の信頼区間も付けていない。各ドナー・刺激条件が別サンプルなので、刺激の効果とサンプルごとの処理の違いは分けられない。
また、公開h5ad内のcountsという名前の層はXと同一で、整数の分子識別子(UMI)カウントではなかった。名前だけで生カウントと判断せず、今回は文書化された正規化済みlog1p値として扱い、カウントモデルの差次的発現解析は行っていない。
結論
M2aとM2cを一つのM2にまとめると、共刺激リガンド、type 2関連、取り込み受容体の三軸で見える二条件の差が割合へ潰れる。共刺激リガンドでは、組成だけで1前後(ドナー1で1.14、ドナー2で0.95)スコアが動く。一方、IFN関連、抗原処理、チェックポイントリガンドでは二条件は近く、括りは今回の尺度上では粗い近似になる。見落とされる情報は、軸によって決まる。この差が機能の差を意味するかは、本データでは確かめられない。原著の交差提示は可溶性抗原の条件で差を示したが、細胞由来の抗原では示さず、RNAスコアを機能の代理として使う根拠にはならない。ドナー2人という範囲で、記述の域を出ない。
データとコードの公開状況
解析コード、26遺伝子の入力抜粋、ドナー別集計、感度分析と再現手順を添付する。データの出典・加工範囲・元ファイルのSHA-256も記録した。原著のFigure 4とMethods、既存集計CSVを2026年10月29日に再照合した。パネルの名前は解釈の便宜であり、検証済みの機能測定値ではない。
参照
- Ginhoux F, Mulder K, Arcila-Barrera S, Amit I. Embracing macrophage complexity for research and translation. Immunity. Published online 2026 Oct 16. doi:10.1016/j.immuni.2026.09.015. Perspective; public abstract only, full text not read.
- Murray PJ, Allen JE, Biswas SK, Fisher EA, Gilroy DW, Goerdt S, et al. Macrophage activation and polarization: nomenclature and experimental guidelines. Immunity. 2014;41(1):14–20.
- Martinez FO, Gordon S. The M1 and M2 paradigm of macrophage activation: time for reassessment. F1000Prime Rep. 2014;6:13. doi:10.12703/P6-13.
- Xue J, Schmidt SV, Sander J, Draffehn A, Krebs W, Quester I, et al. Transcriptome-based network analysis reveals a spectrum model of human macrophage activation. Immunity. 2014;40(2):274–288. doi:10.1016/j.immuni.2014.01.006.
- Modak M, Mattes AK, Reiss D, Skronska-Wasek W, Langlois R, Sabarth N, et al. CD206+ tumor-associated macrophages cross-present tumor antigen and drive antitumor immunity. JCI Insight. 2022;7(11):e155022. Data: GSE199378.
- Lun ATL, Bach K, Marioni JC. Pooling across cells to normalize single-cell RNA sequencing data with many zero counts. Genome Biol. 2016;17:75. doi:10.1186/s13059-016-0947-7.
- Zimmerman KD, Espeland MA, Langefeld CD. A practical solution to pseudoreplication bias in single-cell studies. Nat Commun. 2021;12(1):738. doi:10.1038/s41467-021-21038-1.
- Squair JW, Gautier M, Kathe C, Anderson MA, James ND, Hutson TH, et al. Confronting false discoveries in single-cell differential expression. Nat Commun. 2021;12(1):5692. doi:10.1038/s41467-021-25960-2.