Claudeが見つけた酵素系。その発見は再現できるか
On this page
要旨
ART酵素系の報告を、大規模探索、固定入力の認識、分子機能の証拠に分けて検討した。公開2ゲノムの既知モチーフ検索は上流の反復配置を確認したが、独立した再発見ではない。探索には119タスク・949セッションなど異なる計数単位があり、再実行10回の記録上の再発見0回も成功確率0を意味しない。例示的な二項上限は独立・比較可能な試行と記録基準を仮定する。配列の認識とRNA発現は、ゲノム編集機能の実証とは区別される。
背景と目的
Claudeが、CRISPRに似た特徴を持つ酵素系を見つけたという発表が注目を集めた。何が新しく分かり、どこまで再現できるのだろう。ここで区別したいのは、与えられた配列から特徴を読み取る能力と、大きなデータベースの中でその配列に到達する探索の能力である。
初回の発表 (1)は2026年9月23日。本記事は10月11日公開のYoonらのプレプリントv1 (2)を基準に、探索の記録と検証を読む。公開ゲノム2件で既知モチーフの配置を独自に再計算し、探索の再実行と固定入力の評価が測るものの違いを整理した。
見つかったのはRTの周りの構成だった
ART(array-associated reverse transcriptase)は、逆転写酵素(RT)に関係するタンパク質、その近くのパートナー遺伝子、反復配列群という構成を持つ。RTは一般にRNAを鋳型にDNAを作る酵素だが、この研究の発見を「新しいゲノム編集ツールの完成」と読むことはできない。
対象は、細菌に感染するファージのゲノムなどにある系だ。RTに対応する配列自体は以前のゲノム記録にも存在していた。研究の焦点は、近傍の非コードDNAにある反復配列と、対応するRNA、パートナーを含む系としての特徴にある。原著Results・Figures 1–3 (2)
原著では、公開されたファージ感染時のRNA-seqを解析し、反復配列に由来するRNAの発現を示している。さらに、別の発現実験でも短いRNAが観測された。これは配列の見た目だけより強い証拠だ。一方、これらのRNAとRT・パートナーが何のために働くかは仮説の段階である。CRISPRのように望む場所のDNAを編集できることを実証した結果ではない。
公開配列の確認方法と結果
GenBankのMarsHill(MW248466.1) (3)とSA1(MW218148.1) (4)を使った。原著Methodsにある14塩基のコアモチーフATATGAATACGTATを固定し、1塩基までの不一致を許して、両鎖を検索した。
その後、対応するコード領域(CDS)の上流1,500塩基にあるヒットを取り出した。この窓は今回の診断用であり、原著の全ARTファミリーの反復配列を決める処理を再現したものではない。MarsHillのCDSはGenBankでRNA-directed DNA polymeraseと注釈されているが、SA1の対応CDSはhypothetical proteinとされている。ここで機能を独立に認定したわけではない。
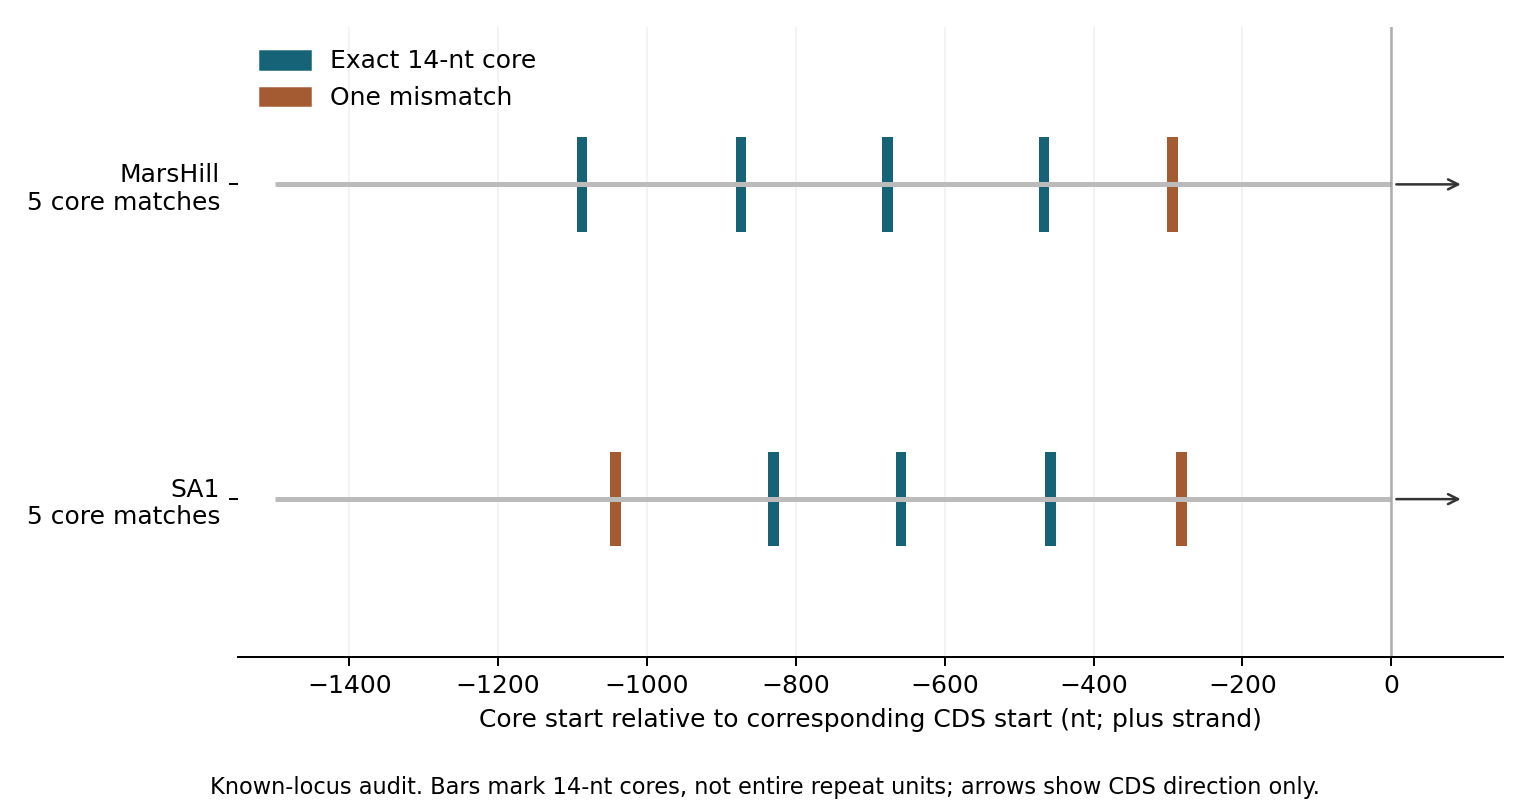
図1。 対応CDSの開始を0として、上流の14塩基コアの配置を示す。青は完全一致、茶は1塩基の不一致。棒は約200塩基の反復単位全体ではなく、14塩基のコアだけを表す。矢印はCDSの向きのみを示し、遺伝子長を表さない。
表1 既知モチーフのヒット数と開始間隔
| ゲノム | 全ゲノム・両鎖のヒット数 | 上流窓のヒット数 | 隣り合うコアの開始間隔(塩基) |
|---|---|---|---|
| MarsHill | 5 | 5 | 213、197、210、173 |
| SA1 | 6 | 5 | 212、171、201、176 |
上流には両者とも5コピーがあり、開始間隔の平均はそれぞれ198.25、190塩基だった。これはスペーサーだけの長さではなく、コアを含む開始点間の距離だ。既知モチーフを指定して見ると、コード領域の外に繰り返しが並ぶことを確認できる。
SA1には、上流窓の外にも1ヒットあった。31,724番からのヒットは別の注釈済みCDS、QPI16945.1の内部にある。短いモチーフに当たることだけでは、非コード領域の反復配列群を特定できない。 複数コピー、間隔、向き、隣接する遺伝子といった配置も必要になる。
この再計算は、論文を読んでからモチーフと座標を選んだ事後的な確認だ。未知の配列からARTを発見したわけではなく、偽陽性率や機能、新規性を検証した結果でもない。関連する2ファージの例を、ファミリー全体の独立した反復数に数えていない。
探索の分母は一つの数字ではない
「約950のエージェント」という表現から、950人の研究者に相当する探索と考えるのは早い。原著の正確な計数は949のセッションであり、起動、作業、監督、整理、編集の役割を含む。同じ役割での再実行もあり、固有のエージェント数や独立した発見数とは違う。原著の探索計数 (2)
表2 報告された探索の各段階と計数単位
| 記録された段階 | 数と単位 |
|---|---|
| 探索対象 | 約19.4億のタンパク質クラスター |
| フィルター後のRT | 198,290クラスター |
| 近傍を調べた対象 | 10,983座位 |
| パートナー候補 | 3,564タンパク質ファミリー |
| 詳細に調べた候補 | 16+追加1ファミリー |
| 新しい対応として報告上保持された候補 | 3ファミリー |
| 最終報告 | 19件 |
| 実行の記録 | 119タスク、949セッション |
これは一本の単純なファネルではない。クラスター、座位、ファミリー、報告は別の単位である。最終19報告には、新しいRT系統に関する3報告も含まれる。17候補のうち2候補が一つの報告にまとまるため、候補数と報告数も一致しない。
17ファミリーのうち3が保持された割合は17.6%だが、これは報告上の新しいRTとの対応についての判定である。実験で機能が確認された酵素のヒット率ではない。残り14は、既知の系、注釈の問題、単に近くにある遺伝子などとして退けられたか保留された。原著の候補集計と詳細解析 (2)
転記した計数では、役割別セッションの合計949、終了・棄却・停止タスクの合計119などをコードで照合した。トークンはキャッシュからの読み込みを除く定義で、丸めた内訳の整合は再実行資料で確認した。
対象を渡した評価と対象へ到達する評価
原著では、同じ探索の仕組みと依頼を使ってキャンペーンをさらに10回行った。ART座位を調べたものや、その系統を追加調査した2キャンペーンがあったが、著者の照合ではRT上流のDNAを読んだ記録がなく、反復配列の再発見は記録されなかった。
ここには監査範囲の制約がある。再実行の確認には、初回探索で付けたRT・contigの識別子などを使っている。原著Methodsは、その識別子集合にないART座位はこの検索では見つからないと明記している。したがって0/10は、あらゆるART発見を網羅した検出率ではない。原著の探索再実行 (2)
別に、ARTの配列を最初から渡す評価も行われた。7モデル・5入力条件にそれぞれ100試行、計3,500試行。配列を本文として渡す場合と、ファイル・解析ツールを渡す場合を分けている。入力レベル4は、既知のART 96座位をファイルで渡すオフライン条件に、予測構造と構造比較ツールも加えた設定だ。
表3 評価で測る能力と報告値
| 評価 | 測っている能力 | 原著の結果 |
|---|---|---|
| 大規模な探索を再実行 | 対象へ到達し、特徴を見つける | 識別子による監査範囲で再発見0/10 |
| ART座位を直接本文へ入れる | 与えられた対象の特徴を認識する | 高性能4モデルで反復配列の認識が90%以上 |
| ART座位をファイルとツールで渡す | ファイルを調べて特徴を認識する | 例としてOpus 5の入力レベル4で32% |
下二行は、既知のARTを入力し、Mythos 5による採点で反復配列の主張を認めた割合だ。非ARTをARTだと言ってしまう頻度まで測った指標ではない。また、90%以上は報告された下限であり、正確に90回だったと置き換えていない。大規模な探索の成功確率に、そのまま使うこともできない。
ファイル入力を使った高性能モデルの試行では、39%が200塩基以上の連続したDNAを読んでいなかったと報告されている。読んだ試行では認識率が高いが、これは観測された行動による層別比較である。配列を読むよう強制すれば同じ改善が得られるという介入効果を確定したものではない。原著Figure 4と固定入力評価 (2)
記録上0回の確率計算
同じ条件のキャンペーンが独立に繰り返され、同じ基準で記録された再発見の確率を\(p\)とする、という計算上の仮定を置く。10回とも記録がない確率は、
\[ P(X=0\mid p)=(1-p)^{10} \]
だ。0回成功の片側95%上限は、
\[ p_{\mathrm{upper}}=1-0.05^{1/10}\approx0.259 \]
となる。
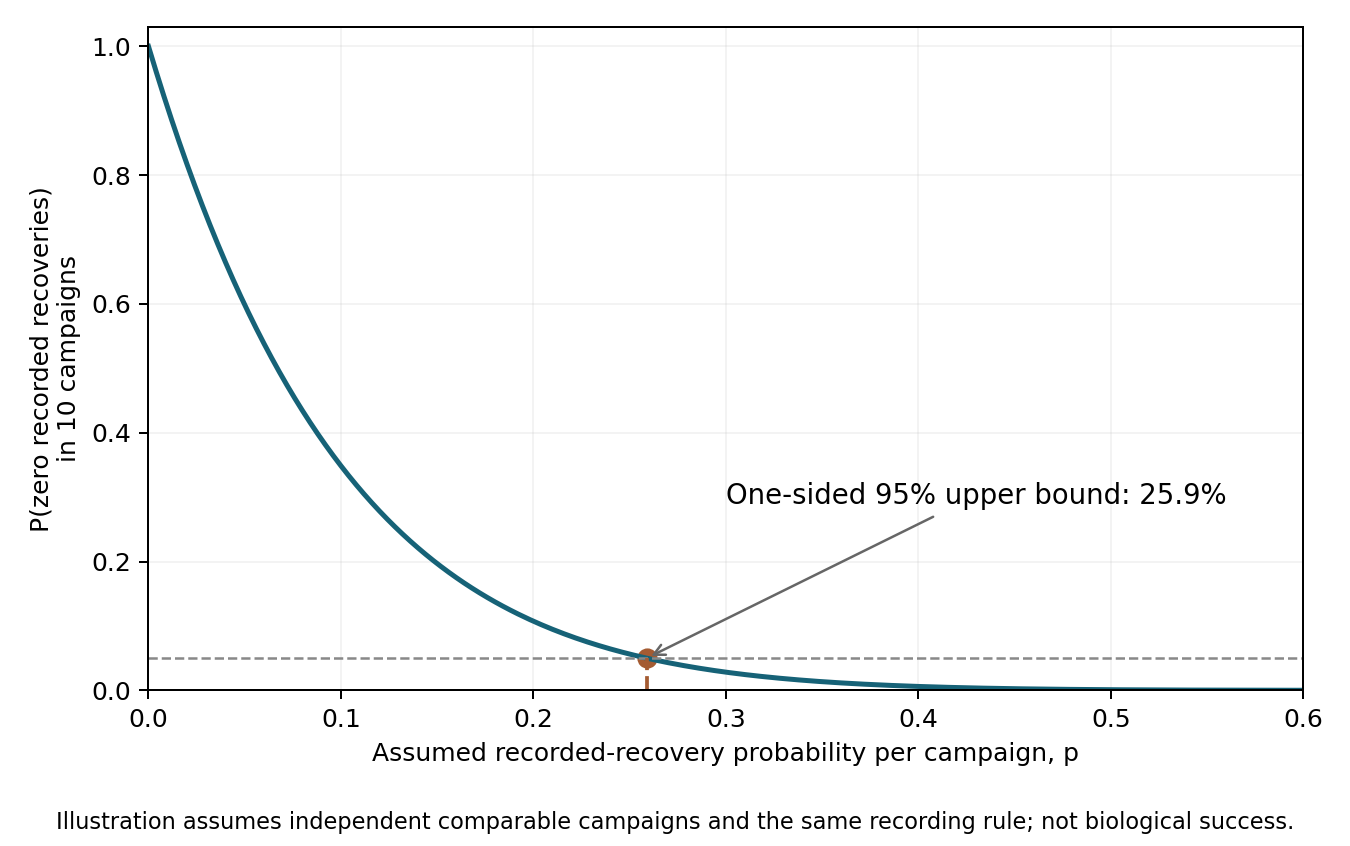
図2。 再発見が記録される確率を仮定したとき、10回とも記録されない確率。点は片側95%上限25.9%に対応する。独立・比較可能な試行と同じ記録基準を仮定した計算例で、ARTの機能成功率や、実証された一般的な発見確率ではない。
この計算は、0/10を真の成功確率0%と断定できないことを示す。一方、約26%の成功率があると推定したわけでもない。ここでの上限は、同じ確率を持つ独立した繰り返しと、定義した記録事象についてのものだ。実際の試行の比較可能性や監査の網羅性は検証していない。
初回の発見を足して1/11にはしていない。初回は、その結果を見て再実行評価を始めるきっかけとなった選ばれた観測であり、再実行10回と同じ評価試行として単純に混ぜられない。この例では、発見の存在と、同じ方法で安定して発見へ進めることを別々に記録する必要がある。
考察
大量の探索で候補が出たことは、その候補の機能まで確認したことではない。候補の選別に使った近傍配置や統計的基準と、選別後のRNAの観測は異なる証拠だ。探索中の検定や仮説が一つの固定集合をなしているとは限らないため、3,564候補という数字だけで全解析の多重比較を処理したとも言えない。
今回の公開配列の再計算は、何を見るべきかが分かった後で近傍配置を確認したものだ。標的タンパク質へ到達した後に、非コード領域を含む系を探索中にどれだけ安定して認識できるかは、この再計算では評価していない。
結論
Claudeが配列の異常な構成を見つけ、研究を始めるきっかけを作ったことと、ゲノム編集の機能や安定した発見過程を完成させたことは、同じ成果ではない。
データとコードの公開状況
再計算コード・公開配列・図をダウンロード。Pythonの標準ライブラリで配列検索・計数照合・9件の計算テストを実行できる。図の再描画にはmatplotlibが必要だ。REPRODUCE.mdに手順と範囲、input-provenance.jsonに取得版・出典・ハッシュを収録した。
入力はGenBankのMW248466.1 (3)とMW218148.1 (4)の配列・座標、および原著v1 (2)の報告数。原著は査読前のプレプリントである。FASTAは公開記録から抽出し、元のGenBank形式やPDF、原著図は再配布していない。図は本記事で独自に作成した。
本解析は公開資料を見た後の探索的な監査である。ARTファミリー全体の推定、RNA-seqの処理、モデル推論、探索ログや採点の独立検証、酵素活性、ゲノム編集機能、臨床上の利用は検証していない。
参照
- Anthropic. Claude discovers a novel enzyme system with CRISPR-like repeats [Internet; developer announcement]. 2026 Sep 23. Announcement.
- Yoon PH, Athukoralage JS, Ameisen E, Kauderer-Abrams E, Perry NT, Durrant MG. Autonomous AI agents discover reverse transcriptases with tandem repeat arrays. bioRxiv [Preprint]. 2026 Oct 11; version 1. Version examined.
- National Center for Biotechnology Information. Staphylococcus phage MarsHill, complete genome [Sequence record]. GenBank accession MW248466.1. Versioned record.
- National Center for Biotechnology Information. Staphylococcus phage SA1, complete genome [Sequence record]. GenBank accession MW218148.1. Versioned record.